نقل قول: سدربرگ ای جی (2026) چگونه مغز در سراسر مرزهای مهم می رقصد. PLoS Biol 24(9):
e3003950.
https://doi.org/10.1371/journal.pbio.3003950
منتشر شده: 2 سپتامبر 2026
حق چاپ: © 2026 آدری جی سدربرگ. این یک مقاله با دسترسی آزاد است که تحت شرایط مجوز Creative Commons Attribution توزیع شده است که استفاده، توزیع و تکثیر نامحدود در هر رسانه را مجاز میکند، مشروط بر اینکه نویسنده و منبع اصلی درج شده باشند.
تامین مالی: نویسنده هیچ بودجه خاصی برای این کار دریافت نکرده است.
منافع رقابتی: نویسندگان اعلام کرده اند که هیچ منافع رقیب وجود ندارد.
نیم قرن پیش، ووس و کلارک متوجه شدند که موسیقی در ژانرهای مختلف نوع خاصی از ساختار را در سازماندهی نوسانات زیر و بم و دامنه نشان می دهد. تجزیه و تحلیل طیف انرژی هر یک از این سیگنال ها یک وابستگی به قانون توان به فرکانس را نشان داد، با انرژی در یک فرکانس معین با فرکانس افزایش یافته به توان () [1]. این یافته مهم بود زیرا چنین قانون قدرتی نشان میدهد که همبستگیهایی در همه مقیاسها وجود دارد، که به طور بالقوه توضیح میدهد که چرا فرمهای اولیه موسیقی مصنوعی مبتنی بر فرآیندهای سادهتر شبیه موسیقی نیستند. ایجاد قوانین قدرت واقعی بی اهمیت نیست: آنها زمانی به وجود می آیند که سیستم ها به انتقال بحرانی نزدیک می شوند و معمولاً نیاز به تنظیم دقیق دارند. فرآیندهای تصادفی هستند که تولید می کنند  ساختار و صداهای تولید شده توسط چنین سکانس هایی جالب است، اما هیچ شنونده ای بتهوون را با حرکت جزئی براونی اشتباه نمی گیرد. تحت نیروی قانون، هماهنگی از الگوها در مقیاس هایی است که مطمئناً قدردانی می شود اما از نظر ریاضی درک نمی شود.
تقریباً یک ربع قرن پیش، قوانین قدرت در اندازه و مدت زمان توزیع رویدادهای فعالیت در بافت عصبی گزارش شد، اولین مشاهده تجربی بحرانی “بهمن” [2]. این قوانین قدرت را می توان با تنظیم شبکه در نقطه بحرانی توضیح داد که در آن یک رویداد کوچک می تواند باعث انتشار در سراسر سیستم شود، درست مانند یک گلوله برفی که می تواند باعث سقوط یک کوه شود. از آن زمان، بسیاری از انواع دیگر از بحرانی شدن در مغز مورد مطالعه قرار گرفته است، مانند مواردی که در آنها پویایی در هنگام عبور از یک مرز بحرانی دچار تغییر کیفی می شود. مطالعه جدیدی توسط Pathak و Battaglia [3] نشان میدهد که صرفاً عملیات روی این مرز بحرانی ممکن است کل داستان نباشد.
در این شماره، Pathak و Battaglia نشان میدهند که چگونه ترکیب دینامیک تعدیلی با انگیزه بیولوژیکی میتواند مشکل تنظیم دقیق را کاهش دهد و در طول مسیر دادههای تصویربرداری عصبی از 100 شرکتکننده در پروژه Human Connectome را بهتر توضیح دهد. آنها با یک مشاهده کنجکاو شروع میشوند: دادههای تصویربرداری عصبی ساختار همبستگیهای بین نواحی مغز را نشان میدهند (“ارتباط عملکردی” یا FC)، اما اگر بر اساس دقیقه به دقیقه بررسی شوند، این همبستگیها بین الگوهای مختلف تغییر میکنند (“دینامیک FC”، به شکل 1 مراجعه کنید). علاوه بر این، در نقاط مختلف رکورد، سرعت تغییر این الگوها ثابت نیست: دورههایی از تغییرات کندتر و سریعتر وجود دارد (شکل 1B). مدلهای استاندارد میانگین FC و سرعتها را میگیرند، اما در توضیح رویدادهای دورهای با سرعت بالا در دادهها ناکام هستند.
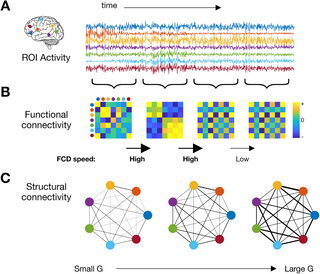
شکل 1. تصویر شماتیکی از دینامیک اتصال عملکردی (FC) و مدولاسیون قدرت جفت جهانی.
A: فعالیت مصنوعی در طول زمان نشان دهنده هفت منطقه مورد علاقه (ROIs) از یک ضبط فرضی fMRI. محل قرارگیری نقاط فقط برای تصویر است. ب: ماتریس FC در بازه های زمانی محدود تخمین زده می شود. ساختار ماتریس FC با زمان تغییر می کند، گاهی با نرخ های بالا (دو انتقال اول) و گاهی با نرخ های پایین (انتقال سوم). ج: اتصال آناتومیکی این شبکه ثابت است، اما میتوان آن را کم یا زیاد کرد. خطوط ضخیم تر نشان دهنده تعاملات قوی تر است. در G کوچکتر، نویز می تواند باعث شود که شبکه بین حالت های فعالیت حرکت کند و ماتریس های مختلف FC و نرخ های بالاتر بین FC های متوالی ایجاد شود. برای G بالا، فعالیت در یکی از الگوهای فعالیت شبکه موجود جمع میشود و FC کندتر تغییر میکند. با ساخت در این مثال، اتصال ساختاری از دو الگو پشتیبانی می کند: یکی، با ROI (1، 2، 3) ضد همبستگی با ROI (4، 5، 6، 7). دیگری، با ROI (1، 3، 5، 7)، ضد همبستگی با ROI (2، 4، 6). مجموعه داده های تصویربرداری عصبی دارای 10 تا 100 ROI در قطعات معمولی هستند و از FCهای بسیار قوی تری پشتیبانی می کنند.
https://doi.org/10.1371/journal.pbio.3003950.g001
نوآوری Pathak و Battaglia بر چندین ویژگی کلیدی مدل استاندارد بنا شده است. دادههای تصویربرداری عصبی انسان را میتوان بهعنوان مجموعهای از نواحی مغز با اتصال آناتومیکی که از MRI انتشاری گرفته شده و ثابت نگه داشته شده اما با قدرت اتصال کلی قابل تنظیم، مدلسازی کرد (شکل 1C). هر منطقه ورودی بازخورد محلی و درایو سیناپسی را از سایر مناطق دریافت می کند. آنها توسط یک تابع انتقال غیر خطی به فعالیت تبدیل می شوند. خروجی هر منطقه با نویز ترکیب شده و از طریق شبکه بازخورد می شود. این مراحل توسط تعداد انگشت شماری از ثابت ها کنترل می شوند که برهمکنش های محلی و جهانی را پارامتر می کنند. قبل از مقایسه با دادههای تصویربرداری عصبی، Pathak و Battaglia رفتار این مدل را بررسی کردند و نشان دادند که دو پارامتر برای تولید FC پویا مهم هستند: جفت جهانی و قدرت نویز.
دلیلی وجود ندارد که فرض کنیم آنچه به عنوان پارامتر به حساب می آید یک متغیر نیست. از آنجایی که موسیقی یک ساختار ثابت است که با تفسیر یک نوازنده زنده می شود، تغییر در برخی پارامترها می تواند به طور پویا حالت های عملکردی شبکه های مغز را تغییر دهد. [4]. Pathak و Battaglia هر یک از پارامترها را به نوبه خود با یک متغیر پویا جایگزین می کنند و می پرسند که کدام یک از این تغییرات (در صورت وجود) توافق بین مدل و داده ها را در توزیع نرخ FC بهبود می بخشد. در اکثر شرکت کنندگان، آنها بهبود قابل توجهی پیدا کردند، به ویژه در اتصال جهانی پویا. آمار مرتبه بالاتر ماتریس های اتصال نیز با مدل اصلاح شده بهتر از مدل استاندارد توضیح داده می شود. اگرچه مدلها هنوز نزدیک به یک حد بحرانی کار میکنند، اما نیازی نیست که روی لبه چاقو قرار بگیرند. نوسانات در جفت جهانی کل سیستم را به حد نزدیکتر یا دورتر از حد می رساند و به سیستم اجازه می دهد تا یک FC پایدار را برای مدتی حفظ کند و سپس به حالت اکتشافی بازگردد. این فرضیه نویسندگان را برانگیخت که به جای تنظیم روی یک نقطه بحرانی واحد، مغز در نزدیکی انتقالهای بحرانی «پرسه میزند» و بین فازهایی با نرخهای بالاتر یا پایینتر تغییر در FC جابهجا میشود.
این ایده که مغز برای بحرانی بودن سیم کشی شده است برای مدت طولانی وجود داشته است، اما ارتباط مستقیم با مفاهیم عملی برای افراد دشوار است. بخشی از این مشکل از جانورشناسی امضاهای بحرانی مورد مطالعه در سیستمهای مختلف و دشواری اثبات یا رد حیاتی بودن یک سیستم ناشی میشود، اما بخش بزرگتر مشکل شناسایی مکانیسمهای بیولوژیکی خاصی است که در امضاهای آماری پیچیده دخیل هستند. مدل توسعهیافته Pathak و Battaglia در لبه یک مرز بحرانی، تحت کنترل پارامترهایی که میتوانند به neuromodulation مرتبط باشند، میرقصند. همانطور که نویسندگان اشاره می کنند، سیستم های تعدیل کننده عصبی با افزایش سن و بیماری تغییر می کنند. رویکرد آنها چارچوبی امیدوارکننده برای درک اینکه چگونه این تغییرات بر پویایی حالت استراحت و در نهایت عملکرد کلی مغز تأثیر میگذارد است.
سوالات باز باقی می ماند. علیرغم الزامات آرامش بخش، برای نزدیک ماندن به حد بحرانی نیاز به کمی تنظیم وجود دارد. علاوه بر این، نورومدولاتورها اثرات پیچیده ای بر عملکرد مدار دارند [5]. در اینجا، قدرت جفت جهانی یک مقدار واحد بود، اگرچه اثرات پایین دستی با توجه به پویایی که ارائه می دهد می تواند بسیار غنی باشد. محاسبه جزئیات پیش بینی ها و اثرات تعدیل کننده عصبی می تواند پیش بینی های مدل را تغییر دهد.
یک آزمایش مستقیم برای اینکه آیا حساب های برانگیختگی عمومی برای نرخ FC توسط کار اخیر ماوس ارائه شده است که نشان می دهد معیارهای ساده انگیختگی عمومی بیشتر ساختار پویا حالت استراحت را به حساب می آورند. [6]. گام بعدی برای این خط کار، نظارت بر انگیختگی شرکتکننده از طریق مردمکسنجی و آزمایش اینکه آیا نوسانات لحظه به لحظه با نرخهای FC پیشبینیشده مطابقت دارد یا خیر.
کار بیشتر و بیشتر در حال گسترش درک ما از معنای مهم بودن مغز و مکانیسمهای موجود در مغز است که این حالت را کنترل میکند. به عنوان مثال، مکانیسم های هموستاتیک می توانند شبکه را به نقطه بحرانی برگردانند [7]. افزودن بازخورد خود میتواند مجموعه یک مدل سادهتر را برای ایجاد نوسانات و بهمن گسترش دهد و مشاهدات در ضبطهای MEG انسانی را توضیح دهد. [8]. مدلهایی که در آنها نورونها با متغیرهای نهفته آهسته و کمبعد جفت میشوند، نشانههای متعددی از بحرانی بودن در سیستمهای عصبی را نشان میدهند. [9,10]. از مطالعه حاضر، اجازه دادن به اتصال سراسری برای نوسان به شبکه ها اجازه می دهد تا بین حالت ها، یا در فضای شبکه کاوش کنند یا در یک پیکربندی پایدار قفل شوند. درک اینکه چگونه مغز این انعطافپذیری را کنترل میکند و چگونه این کنترل در طول عمر تغییر میکند، ممکن است پیامدهای مهمی برای سلامت و رفاه انسان داشته باشد. سوال این نیست که آیا سیستم بحرانی است یا خیر. در عوض، چگونه این ساختارهای آماری را از نظر مکانیسم های عصبی که آنها را تولید می کنند درک کنیم؟ به عبارت دیگر، قانون قدرت هدف نیست: زمان گوش دادن به موسیقی است.