نقل قول: Su C-Y (2026) چگونه حس دی اکسید کربن پشه تقویت داخلی می شود. PLoS Biol 24(9):
e3003958.
https://doi.org/10.1371/journal.pbio.3003958
منتشر شده: 11 سپتامبر 2026
حق چاپ: © 2026 Chih-Ying Su. این یک مقاله با دسترسی آزاد است که تحت شرایط مجوز Creative Commons Attribution توزیع شده است که استفاده، توزیع و تکثیر نامحدود در هر رسانه را مجاز میکند، مشروط بر اینکه نویسنده و منبع اصلی درج شده باشند.
تامین مالی: این کار توسط بودجه راه اندازی CS از آکادمی تحقیقات و ترجمه پزشکی شنژن (SMART) پشتیبانی شد. سرمایهگذاران هیچ نقشی در طراحی مطالعه، جمعآوری و تجزیه و تحلیل دادهها، تصمیمگیری برای انتشار، یا تهیه نسخه خطی نداشتند.
منافع رقابتی: نویسندگان اعلام کرده اند که هیچ منافع رقابتی وجود ندارد.
اختصارات:
LN،
نورون محلی؛ OSN،
نورون حسی بویایی؛ PN،
نورون های فرافکنی
پشه ها کشنده ترین حیوانات روی زمین هستند و Aedes Aegypti جزو خطرناک ترین هاست توانایی خارقالعاده آن در یافتن ما و انتقال بیماریهایی مانند دنگی، زیکا، چیکونگونیا و تب زرد به دی اکسید کربن (CO) متکی است.2). در حالی که سایر بوها، گرما و نشانه های بصری در این امر نقش دارند، CO2 با فعال کردن پشه و حساس کردن آن به حضور ما نقش ویژه ای ایفا می کند [1]. اینکه چگونه یک سیستم حسی به چنین پاسخ رفتاری قدرتمندی از یک سیگنال شیمیایی واحد دست می یابد، یک سوال طولانی مدت بوده است.
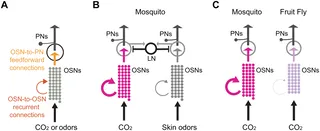
در سیستم بویایی حشرات، اطلاعات حسی از نورونهای حسی بویایی (OSNs) به سمت لوب آنتن میرود، جایی که سیناپسهای تحریکی سیگنالها را به نورونهای برونافکنی و سپس به مراکز بالاتر مغز منتقل میکنند (شکل 1A). برخورد پشه با میزبان ها نه تنها CO را تشخیص می دهد2 بلکه مخلوط پیچیده ای از بوی پوست است. هنگامی که چندین OSN به طور همزمان فعال می شوند، نورون های محلی بازدارنده را درگیر می کنند که به پایانه های آکسونی OSN برمی گردند، جایی که خروجی سیناپسی را از طریق گیرنده های GABA بیان شده در OSN ها کاهش می دهند (شکل 1B). این بازخورد منفی اکثر OSN های فعال را سرکوب می کند، یک مکانیسم عادی سازی قطع کننده که سیگنال های دریافتی را کاهش می دهد تا محدوده دینامیکی سیستم حفظ شود. [2–4]. اساساً، با کاهش حساسیت کلی، مهار جانبی تضمین میکند که تفاوتهای ظریف بین مواد خوشبوکننده قابل تشخیص باقی میمانند و در عین حال از اشباع شدن سیستم حتی در شدت بو بالا جلوگیری میکند.
شکل 1. معماری شماتیک مقایسه ای CO2– و OSN ها بو را در پشه ها و مگس ها حس می کنند.
(الف) نورونهای حسی بویایی حشرات (OSNs) که گیرندههای مشابهی را بیان میکنند در یک گلومرول (دایره) منفرد در لوب آنتن جمع میشوند و در آنجا روی نورونهای برونتابی (PNs) سیناپس میشوند. این مطالعه بر روی دو موتیف مدار متمرکز است: اتصالات مکرر OSN به OSN (برای تقویت سیگنال) و اتصالات OSN-به-PN رو به جلو (برای رله اطلاعات). (ب) OSN ها همچنین روی نورون های موضعی مهاری (LNs) سیناپس می شوند. هنگامی که چندین OSN به طور مشترک فعال میشوند، نورونهای محلی را برای واسطهگری مهار جانبی جهانی برای عادیسازی تقسیمبندی بهکار میگیرند. در پشه ها، هر دو CO2– و OSN های خوشبو گیرنده های GABA را بیان می کنند (احتمالاً در پایانه های آکسونی آنها) که آنها را مستعد این مهار می کند. فقط CO2OSN های حساس اتصالات مکرر قوی را نشان می دهند که سیگنال خروجی آنها را تقویت می کند و از آن در برابر عادی سازی تقسیم محافظت می کند. (ج) اتصال مکرر قوی در بین COs پشه مشاهده شد2OSN های حساس، اما در هر دو CO وجود ندارد2– یا OSN های معطر مگس میوه. تصاویر اقتباس شده از بائو و همکاران [5].
https://doi.org/10.1371/journal.pbio.3003958.g001
این یک مشکل بالقوه را نشان می دهد: اگر نرمال سازی تقسیم CO CO را کاهش دهد2 پشه به اندازه بوهای پس زمینه سیگنال می دهد، ممکن است پشه به اندازه کافی برای جستجوی میزبان تحریک نشود. در یک مطالعه جدید در PLOS Biology، بائو، آلفورد و همکارانش از یک اتصال دهنده با وضوح بالا برای نشان دادن چگونگی CO استفاده کردند.2 مدار بر این معما غلبه می کند [5].
نویسندگان با استفاده از میکروسکوپ الکترونی انتقال مقطع سریال خودکار، مدار سه گلومرول عصبشده توسط OSNها از کف فک بالا، از جمله CO را بازسازی کردند.2– گلومرول پاسخگو و دو گلومرول مجاور که اطلاعات را از OSN های بو می گیرند. یافتههای آنها نشان دهنده انحراف چشمگیر از معماری استاندارد مدار بویایی است. CO2OSN های حسگر تعداد غیرمنتظره زیادی از سیناپس های برگشتی یا متقابل را با یکدیگر در مقایسه با همتایان خوشبو تشکیل می دهند (شکل 1B). در واقع این CO ها2 نورونها سیگنالهای بیشتری را نسبت به نورونهای هدف خود ارسال میکنند. آن را به عنوان یک محفظه اکو در نظر بگیرید: CO2 پیام قبل از اینکه در بالادست منتقل شود بین همان نورون ها باز می گردد. این “پژواک” داخلی مداری را ایجاد می کند که به طور خاص برای تقویت CO حتی ضعیف سیم کشی شده است2 whiff – تبدیل یک سیگنال ظریف به یک سیگنال بلند و شنیدنی.
برای درک اهمیت عملکردی این محفظه اکو، تیم یک مدل محاسباتی ساخت. شبیه سازی آنها نشان می دهد که اتصال مکرر یک کنجکاوی تشریحی نیست، بلکه یک استراتژی محاسباتی برای CO قابل اعتماد است.2 کشف در دنیای پر سر و صدا بویایی بدون تقویت، سیگنال های ضعیف در میان بوهای پس زمینه از بین می روند. با آن، تشخیص پایدار می شود. با این حال، این مدل یک مبادله را نیز نشان داد: تقویت مکرر حساسیت را افزایش میدهد، اما خطر هشدارهای کاذب را نیز افزایش میدهد. این نشان می دهد که مغز پشه برای تشخیص CO اولویت بندی شده است2– یک نشانه اخلاقی حیاتی برای بقا – بالاتر از تبعیض.
اهمیت مطالعه فراتر از نمودار مدار ساده است. نویسندگان یک تخصص تشریحی بالقوه را شناسایی کردند که زیربنای این سیگنال دهی مکرر است: وجود ساختارهای پیش سیناپسی روبان مانند در این سیناپس ها. این ساختارها، که نشانههای رهاسازی پایدار و درجهبندیشده وزیکولهای سیناپسی در سیستمهای حسی مهرهداران هستند. [6]، تاکنون در بی مهرگان شناسایی نشده است. حضور آنها در سیناپس های CO پشه2 OSN ها مکانیزم تکامل یافته همگرا را برای انتقال سیناپسی پایدار پیشنهاد می کنند. نویسندگان همچنین شواهدی را ارائه میکنند که این OSNها گیرندههای استیل کولین نیکوتینی را بیان میکنند و از احتمال تحریککننده بودن این اتصالات مکرر حمایت میکنند.
پیامدهای گسترده تری چیست؟ اولاً، منطق مدار به تنهایی توسط هویت بو یا گیرنده تعیین نمی شود. هم مگس ها و هم پشه ها CO را تشخیص می دهند2 با استفاده از گیرنده های ارتولوگ [7]، اما معماری زنجیره ای آنها متفاوت است. برخلاف پشه CO2 گلومرول، CO مگس2 گلومرول ها (یا گلومرول های بویایی) فاقد اتصال عود کننده متراکم هستند (شکل 1C). این احتمالاً منعکس کننده نقش اخلاقی متضاد آنهاست: مگس ها CO را تفسیر می کنند2 توسط ab1C OSN به عنوان یک سیگنال هشدار شناسایی شده و از آن اجتناب کنید، در حالی که پشه ها دقیقاً همان گاز را به عنوان سیگنال برانگیختگی تفسیر می کنند و از آن برای جهت دهی به میزبان خود استفاده می کنند. [7]. مورفولوژی این تقسیم را تقویت می کند: پشه CO2– نورون های حسی تقریباً 6 برابر سطوح حسی بزرگتری نسبت به مگس ها دارند [8,9]، که به طور بالقوه CO را بهبود می بخشد2 حساسیت به عبارت دیگر، مگس ها و پشه ها CO یکسان را تشخیص می دهند2 نشانه اما CO آنها2– نورون های حساس به وضوح به هم متصل و شکل گرفته اند که هر کدام منعکس کننده الزامات اخلاقی خاص گونه های خود هستند.
قابل توجه، در مگس ها و (احتمالا) پشه ها CO2– گلومرول های حساس می توانند از عادی سازی تقسیم بندی فرار کنند – اما آنها این کار را با روش های کاملاً متفاوت انجام می دهند. مگس ها با تنظیم مجدد گیرنده های GABA CO خود به این امر دست می یابند2گلومرول حساس، به طور موثر از آن در برابر مهار جانبی محافظت می کند [4]. در مقابل، پشهها سطوح طبیعی بیان گیرنده GABA را حفظ میکنند و احتمالاً مستعد مهار جانبی هستند، اما انتظار میرود اتصالات مکرر سیگنال را برای دور زدن عادیسازی تجزیهای تقویت کنند. اینکه همان هدف گلومرولی با چنین استراتژیهای متفاوتی از محدودیت مشابه فرار میکند – تنظیم گیرنده در مقابل مهندسی مدار – قابل توجه است و مطالعه تطبیقی آینده اهمیت فیزیولوژیکی آنها را تضمین میکند.
با نگاه به آینده، این کار چندین راه جدید را باز می کند. فوری ترین اولویت اعتبار سنجی عملکردی است: علیرغم چالش فنی بیشتر در پشه ها در مقایسه با مگس میوه، آزمایش ها باید تایید کنند که CO2گلومرول حساس از عادی سازی تقسیمی جلوگیری می کند و آزمایش می کند که آیا اختلال در اتصال مکرر CO را به خطر می اندازد یا خیر2 کشف در سطح مدار، کانکتوم کل مغز چگونگی CO را روشن می کند2 با سایر سیگنال های میزبان ادغام می شود. در نهایت، ارتباط نسبی بین جنسها و گونههای پشهها با ترجیحات میزبان متفاوت ممکن است نشان دهد که آیا رابطه مکرر به طور گسترده در بین پشههای جویای خون حفظ میشود یا خیر.
تا کنون، بائو، آلفورد و همکارانش طرحی منسجم ارائه کرده اند که چگونه یک پشه کشنده حضور ما را با حساسیت بسیار زیاد تشخیص می دهد. فاش شدن CO2 مدار نه تنها یک رله بلکه یک محفظه پژواک است، آنها یک استراتژی کلیدی را برای مدار آشکار کرده اند و دری را به روی سؤالات جدیدی در مورد اینکه چگونه مغز سیگنال های مهم برای بقا را اولویت بندی می کند، باز کرده اند.