نقل قول: Mock T، Bilcke G، Flaum E، Fu S، Hoch L، Moog K، و همکاران. (2026) پروژه 100 ژنوم دیاتوم. PLoS Biol 24(9):
e3003947.
https://doi.org/10.1371/journal.pbio.3003947
منتشر شده: 1 سپتامبر 2026
این یک مقاله با دسترسی آزاد و بدون هرگونه حق چاپ است و ممکن است آزادانه تکثیر، توزیع شود، منتقل شود، تغییر داده شود، ساخته شده یا توسط هر کسی برای هر هدف قانونی استفاده شود. این اثر تحت مالکیت عمومی Creative Commons CC0 در دسترس است.
تامین مالی: کار (پیشنهاد: https://doi.org/10.46936/10.25585/60001393) انجام شده توسط مؤسسه ژنوم مشترک وزارت انرژی ایالات متحده (https://ror.org/04xm1d337)، کاربران دفتر علوم DOE، توسط اداره علوم قراردادی وزارت انرژی ایالات متحده پشتیبانی می شود. DE-AC02-05CH11231.TM حمایت شورای تحقیقات محیط زیست طبیعی انگلستان (NE/Z504130/1، NE/W005654/1، NE/R015449/2 و NE/T000848/1) را تأیید می کند. GB، ST، MVB، NR، KV، EPi، EPo، DL و WV بودجه بنیاد تحقیقات فلاندر (1228423N, 11L2325N, 1221323N, I000323N, G001521N, و 01G013) را تأیید می کنند. 01G01323، BOF/STA/202409/019) و شورای تحقیقات اروپا (DIADAPT، 101160805)، و همچنین سیاست علمی بلژیک (Belspo) برای حمایت از مجموعه دیاتومها BCCM/DCG و پروژه EMBRC بلژیک-FWON برای تأمین مالی زیرساختی GOH3817. NC، ZC، و SL توسط بنیاد ملی علوم طبیعی چین (NSFC، شماره 42561144237) و e-ASIA (شماره DM1414) پشتیبانی شدند. TM، SF و YZ حمایت بنیاد ملی علوم طبیعی چین (42276134) را تایید می کنند. SF حمایت شورای بورس تحصیلی چین (202106330017) را تایید می کند. GR، VDD و FDC حمایت وزارت دفاع بینالمللی ایتالیا (PGR05972) را تأیید میکنند. EF توسط برنامه کمک هزینه تحصیلی فوق دکتری EIPOD-LinC پشتیبانی می شود. GD حمایت کمیسیون اروپا (KaryodynEVO, 101078291) و برنامه محقق جوان را تأیید می کند.EMBO. GD و EF EMBL را برای تامین مالی اصلی تایید می کنند. NP توسط Deutsche Forschungsgemeinschaft (PO 2256/1-1) پشتیبانی می شد. CJ توسط یک فلوشیپ فوق دکتری MSCA (GA101153556) پشتیبانی شد. KEH از حمایت شورای تحقیقات بیوتکنولوژی و علوم زیستی بریتانیا (BB/W006286/1)، شورای تحقیقات اروپا (101170086) و شورای تحقیقات محیط زیست طبیعی بریتانیا (NE/R015449/2) بنیاد تحقیقات کره (RS-2023-30029) و موسسه فناوری کرهای (RS-2023-30029) و فناوری کره جنوبی (RS-2023-30029) قدردانی میکند. بودجه توسط وزارت آب و هوا، انرژی و محیط زیست (RS-2021-KE001788). FV، JR، JBK و TB از حمایت بنیاد یونان برای تحقیق و نوآوری (RADIO/483)، اتحادیه اروپا (GHaNA/734708) و صندوق توسعه منطقهای اروپا قدردانی میکنند. با سرمایه مشترک یونان و اتحادیه اروپا (NSRF 2014-2020/CMBR/MIS 5002670). TB توسط بنیاد تحقیقات آلمان (DFG) از طریق مرکز تحقیقات مشترک فرامنطقه ای “رزوباکتر” (TRR 51) تامین مالی شد. AJA، ECR، و WRR توسط بنیاد ملی علوم ایالات متحده (Grant DEB-2331644) پشتیبانی شدند. TAR حمایت بنیاد ملی علوم ایالات متحده (جایزه 2227425) را تأیید می کند. سرمایه گذاران هیچ نقشی در طراحی مطالعه، جمع آوری و تجزیه و تحلیل داده ها، تصمیم به انتشار یا تهیه نسخه خطی نداشتند.
منافع رقابتی: نویسندگان اعلام کرده اند که هیچ منافع رقیب وجود ندارد.
مقدمه
دیاتوم ها، غنی ترین شاخه جلبکی از گونه ها، در تمام محیط های آبی و برخی از محیط های خشکی یافت می شوند و اغلب بر تولید اولیه غالب هستند. آنها حدود 20 درصد از تثبیت کربن جهانی سالانه را به همراه دارند و پمپ کربن بیولوژیکی را که کربن آلی را در اعماق دریا جدا می کند، هدایت می کنند. [1]، اما نمونهبرداری ژنومی فعلی به شدت به سمت تعداد محدودی از گونههای مدل سوگیری دارد [2]پروژه ژنوم 100 دیاتوم (100DGP) با شناخت نقش اساسی آنها در حفظ قابلیت سکونت زمین، به عنوان یک پروژه بین رشته ای بین المللی با گرد هم آوردن 108 محقق از 11 کشور برای استفاده از ژنومیک دیاتوم ها در طیف گسترده ای از رشته های علمی، تأسیس شد. گسترش بازنمایی ژنوم در کلادهای متنوع دیاتوم ها، سوله های زیست محیطی و تاریخچه زندگی، ژنومیک مقایسه ای را با وضوح بالا برای ردیابی نوآوری های تکاملی تسهیل می کند.
رویکردهای مطالعه دیاتومها در 100DGP
انتخاب گونه بر اساس ملاحظات عملی، از جمله در دسترس بودن سویه ها در مجموعه های کشت و آزمایشگاه های دیاتوم ها در سراسر جهان، نرخ رشد ذاتی، و امکان به حداقل رساندن آلاینده های پروکاریوتی بود. نقاط بازرسی اضافی کیفیت و کمیت gDNA قابل استخراج و RNA کل بود که هر دو می توانند به طور قابل توجهی بین گونه ها متفاوت باشند. تا به امروز، سویه های نماینده 104 گونه دیاتومه ارزیابی مناسب بودن ما را پشت سر گذاشته اند و از این میان 20 گروه مشروح در دسترس هستند (شکل 1a؛ https://doi.org/10.5281/zenodo.21360381). اگرچه این 104 دیاتومه همه کلادهای اصلی را پوشش می دهند، به دلیل در دسترس بودن سویه و قابلیت کشت، امکان نمونه برداری جامع از همه تنوع دیاتومه ها وجود ندارد. برای کاهش این محدودیتها، ما قصد داریم این پروژه را فراتر از 100 ژنوم دیاتومها گسترش دهیم.
شکل 1. انتخاب گونه ها و تنوع در فضای ژنی پروژه ژنوم 100 دیاتومی.
الفتصویر زیر یک طراحی ساده از 10 کلاس فیلوژنی دیاتومها است. [2]در هر کلاد، تعداد گونههای پروژه ژنوم 100 دیاتوم (100DGP) و همچنین تعداد گونههایی که در حال حاضر در AlgaeBase توضیح داده شده است (جستجو در 3 مه 2026) نشان داده شده است. نام گونههایی که هم مونتاژ ژنوم و هم حاشیهنویسی در سمت راست نشان داده شده است، نشان داده شده است. ب نمونه ای از داده های رونویسی تولید شده به عنوان بخشی از 100DGP نشان داده شده برای Craspedostauros australis.نقشه حرارتی گزارش را نشان می دهد2 تغییرات برابری 193 ژن پاسخگو به دیل شناسایی شده برای سلولهای رشد یافته در دوره نوری 14 ساعته: 10 ساعت نوری (تصحیح P 2FC > 2 یا log2FC c. کلادوگرام دیاتومههای منتخب و گونههای برونگروهی که برای تخمین تکامل فضای ژنی بر اساس روابط فیلوژنتیکی از [2]. در مجموع 22 ژنوم دیاتوم ها که 17 جنس را در بر می گیرند، برای تجزیه و تحلیل ژنومی مقایسه ای مقدماتی انتخاب شدند که 9 ژنوم اول مشروح شده از 100DGP و 13 مجموعه در دسترس عموم را ترکیب می کنند. نقشهها (نه در مقیاس) گونههای انتخاب شده تنوع مورفولوژیکی و فراساختاری دیاتومهها را نشان میدهد. د نمودارهای نواری که نسبت خانواده های ژن را با توزیع واضح در ژنوم دیاتوم ها نشان می دهد: یک “هسته” که در همه ژنوم های دیاتوم ها ظاهر می شود. یک “هسته نرم” که در همه ژنومها به جز یک یا دو دیاتوم وجود دارد. “کمبود” که در ژنوم 2-19 دیاتوم ظاهر می شود. و “منحصر به فرد” در یک ژنوم تک دیاتوم ظاهر می شود. برای هر کلاس توزیع، نمودارهای دایره ای نسبتی را نشان می دهند که حداقل با یک عبارت هستی شناسی ژن (GO) حاشیه نویسی شده است، در حالی که نمودارهای حبابی اهمیت غنی سازی 3 عبارت برتر GO غنی شده را که با rrvgo حذف شده اند را نشان می دهد. [3]. AdjP: مقدار p برای نرخ کشف نادرست تنظیم شده است. ه. منحنی نادری پانژنومیک [4] نشان دادن تعداد خانوادههای ژنی شناساییشده با افزایش تعداد جنسهای دیاتومهای توالیشده. هم تعداد کل خانوادههای ژنی شناساییشده (صورتی، پان) و هم تعداد خانوادههای شناساییشده در همه جنسها (آبی، هسته) مشاهده میشوند. f. قانون هیپ (خط سیاه) تعداد کل خانوادههای ژنی مورد انتظار را پیشبینی میکند که وقتی تعداد فزایندهای از جنسهای دیاتومه نمونهبرداری میشود. سایه صورتی روشن فاصله پیش بینی را نشان می دهد، صورتی تیره فاصله اطمینان را برجسته می کند.
https://doi.org/10.1371/journal.pbio.3003947.g001
پورتال 100DGP به کاربران امکان دسترسی به مجموعه های ژنوم، رونوشت ها و حاشیه نویسی ها را می دهد. ترکیبی از توالی خوانی طولانی (PacBio HiFi CCS) و خواندن کوتاه (Illumina NovaSeq X & S4) برای تولید مجموعه های ژنومی حل شده با هاپلوتیپ و ژنوم اندامک ها استفاده شده است و مجموعه متنوعی از رونوشت ها (IsoSeq، RNAseq) برای ژنومی از همه گونه ها تولید شده است. بهعلاوه، برای زیرمجموعهای از گونهها، رونوشتهایی از فرهنگهایی که در معرض چرخههای نور/تاریکی یا دمای بالا برای مطالعات عملکردی مقایسهای آتی بودند (Illumina NovaSeq) تولید شد (شکل 1b؛ https://doi.org/10.5281/zenodo.21360381). هیفائومی [5]، با راکون جلا داده شده است [6]، و با استفاده از خط لوله حاشیه نویسی JGI حاشیه نویسی شد [7]برای ارائه رابط های کاربر پسند برای ژنومیک مقایسه ای، تجزیه و تحلیل های بیوانفورماتیک متعددی از طریق PhycoCosm انجام و ادغام شدند. [8] (JGI، برکلی، ایالات متحده آمریکا) و سکوهای PLAZA (VIB، گنت، بلژیک) (شکل 1c-1f).
برای پر کردن شکاف بین گونههای ژنتیکی و ویژگیهای اساسی کلیدی، ما آنالیزهای omics خود را با میکروسکوپ نور و گسترش (ExM) و فنوتیپ با توان عملیاتی بالا (phenomics) تکمیل میکنیم (شکل 2). به عنوان تکنیکی که به محققان امکان بزرگنمایی فیزیکی روی دیاتوم ها را می دهد، ExM توسعه نشانگرهای مولکولی را برای حل مکان یابی درون سلولی پروتئین ها با دقت نانومتری تسهیل می کند، از جمله آنهایی که قبلاً توسط ژن های نامشخص یا خاص کدگذاری شده بودند. پلتفرم فنوتیپ با کارایی بالا ما باید نشان دهد که آیا و چگونه پروتئین های انتخاب شده بر صفات قابل اندازه گیری (به عنوان مثال، جذب کربن) و انعطاف پذیری فنوتیپی آنها تأثیر می گذارد یا خیر (شکل 2b). دومی با استفاده از شاخص پلاستیک استاندارد شده بومشناختی (*ESPI)، یک معیار اخیراً توسعهیافته که پاسخهای صفت را در شیبهای محیطی کنترلشده ادغام میکند تا وسعت و بزرگی انواع پاسخهای پلاستیکی خاص صفت را ادغام کند، اندازهگیری میشود. [9]. با استفاده از *ESPI، شکل پذیری صفت را بین گونهها مقایسه میکنیم و تفاوتهای پاسخ پلاستیکی آنها را به سولههای اکولوژیکی، الگوهای توزیع جهانی و بنابراین پتانسیل تطبیقی مرتبط میکنیم. بنابراین، این چارچوب یکپارچه پایهای را برای هستیشناسی ویژگیهای مکانیکی میگذارد، که برای درک تاریخچه تکاملی دیاتومها و سازگاری صفات مهم ضروری است.
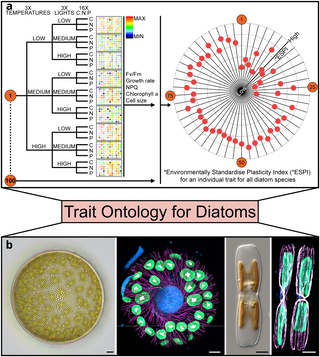
شکل 2. فنومیک، تصویربرداری و فیزیولوژی سلولی.
الف یک خط لوله فنوتیپ با کارایی بالا برای تعیین کمیت صفات کلیدی (حداکثر بازده کوانتومی PSII (Fv/Fm)، سرعت رشد، اندازه سلول، محتوای کلروفیل-a و خنکسازی غیرفتوشیمیایی (NPQ))، تحت شرایط محیطی مختلف (3x دما، 3x شدت نور، 16×00 سانتیگراد). این دادهها برای تعیین کمیت انعطافپذیری فنوتیپی با استفاده از یک شاخص انعطافپذیری استاندارد شده محیطی (*ESPI)، که نشاندهنده طیف واکنشهای فنوتیپی هر گونه به شرایط محیطی در حال تغییر است، استفاده خواهد شد. این معیار برای تسهیل مقایسه بین گونهای انعطافپذیری فنوتیپی طراحی شده است و به درک بهتر واکنش این پدیده به تغییرات آب و هوایی امکانپذیر میشود. بزرگترین تغییر در پاسخ برای یک صفت با استفاده از فاصله اقلیدسی بین محیطهایی که در آن پاسخها برای کمیسازی انعطافپذیری در واحد تغییر محیطی رخ داده است، نرمال شد. در نمودار شعاعی *ESPI، هر نقطه قرمز نشان دهنده مقدار *ESPI برای یک مشخصه معین برای هر یک از 100 گونه دیاتومه است. مجموع بالاتر * مقادیر ESPI نشان دهنده انعطاف پذیری فنوتیپی بیشتر است. نمودار شعاعی پایین *ESPI را در مرکز و بالا را به سمت بیرون نشان می دهد. اطلاعات از (الف) و (ب) ادغام خواهند شد تا یک هستی شناسی صفت برای دیاتومه ها ایجاد شود. ب مورفولوژی سلولی Coscinodiscus granii (سمت چپ) و Craspedostauros australis (سمت راست) با استفاده از میکروسکوپ نور و انبساط (ExM) برای نشان دادن توزیع نانومقیاس کمپلکسهای مولکولی: توبولین (سرخابی)، فتوسیستم II (سبز)، هسته و دیواره سلولی سیلیکونی (آبی)، استر NHS (سفید). نوارهای مقیاس سیاه 5 میکرومتر هستند. میله های مقیاس سفید به ترتیب 20 میکرومتر (مقیاس بیولوژیکی 4.65 میکرومتر) و 5 میکرومتر (1.37 میکرومتر مقیاس بیولوژیکی) هستند.
https://doi.org/10.1371/journal.pbio.3003947.g002
منابع و بینش های اولیه برای پیشرفت در تحقیقات یکپارچه دیاتوم
مطابق با اصول یافتپذیری، دسترسی، قابلیت همکاری، و قابلیت استفاده مجدد (FAIR) در مدیریت دادههای علمی، 100DGP روشهای آزمایشگاهی، از جمله روشهای عملیاتی استاندارد، کد و مجموعهای متنوع از منابع (مانند ژنوم، رونوشتها، تصاویر و دادههای صفت) را منتشر میکند و با هم یک مجموعه یکپارچه از مجموعه دادههای تابعی را تشکیل میدهد که میتواند برای مطالعات مجموعههای دادهای در آینده استفاده شود. ما محققان را تشویق میکنیم از این منابع، از جمله سویههای دیاتومههای رسوبشده در مجموعه دیاتومههای BCCM/DCG (گنت، بلژیک) استفاده کنند. برخی از سویه ها نیز از NCMA (Bigelow، East Boothbay، Maine، ایالات متحده آمریکا)، RCC (Roscoff، فرانسه) و CCAP (Oban، انگلستان) در دسترس هستند. ادغام دادههای ژنوم، رونوشتها، تصویربرداری در مقیاس نانو و فنومیک برای هیچ گروهی بیسابقه است و به ما این امکان را میدهد که ژنومیک تکاملی مقایسهای را در زمینه زیستشناسی سلولی، متابولیسم و اکولوژی برای پرسشهایی که فراتر از نقش ژنهای فردی است قرار دهیم. اولین مجموعههای ژنوم اکنون در دسترس عموم هستند (پورتال 100DGP)، که طیفی از اندازههای ژنوم (75 تا 1033 مگابیت در ثانیه) و تغییرات بیش از 3 برابری در تعداد ژن را نشان میدهد. تجزیه و تحلیل های مقایسه ای آینده از طریق PhycoCosm منتشر خواهد شد [8]، DiatOmicBase [10]و PLAZA Diatoms: پلتفرم های ژن محور چندوجهی برای تحقیقات یکپارچه دیاتوم ها.
محققان خارجی میتوانند از این منبع برای پیوند دادن خروجی ژنومیک تکاملی مقایسهای (مانند مکانهای ژنومی تحت انتخاب) با کشف زیستمولکولها در مقیاس نانومتری و نحوه شکلدهی آنها به صفات کلیدی مانند جذب کربن، استفاده از مواد مغذی، تنوع مورفوتیپ و تنظیم چرخه زندگی استفاده کنند. فراتر از تحقیقات بنیادی، مجموعه دادههای یکپارچه ما میتوانند برای پیوند انواع ژنتیکی به عملکرد in vivo پروتئینهای کدگذاریشده و سایر ترکیبات فعال زیستی برای پیشبرد کاربردهای فناوری مانند کشف دارو یا بهینهسازی فرآیندهای زیستی مورد استفاده قرار گیرند. [11].
بینش های اولیه بر اساس تجزیه و تحلیل مقایسه ای 22 ژنوم دیاتومه های جدید و موجود نشان داد که فقط شکل 1d). خانواده های ژنی با انجام یک جستجوی همسانی همه در مقابل همه بین پروتئوم های دیاتومه و برونگروه با استفاده از DIAMOND با خوشه بندی بعدی در خانواده های ژنی با استفاده از الگوریتم tribeMCL شناسایی شدند. از زمان ظهور دیاتومها در بیش از 250 میلیون سال پیش، سطح بالایی از تنوع ژنتیکی از طریق ترکیبی از تکامل واگرا در خانواده های ژنی موجود و ظهور ژن های جدید، چه از طریق تولد ژن جدید و چه از طریق انتقال افقی ژن ایجاد شده است. [12]. اگرچه بیشتر اصطلاحات هستی شناسی ژن غنی شده در پان ژنوم مشترک دیاتوم ها نشان دهنده ژن های دخیل در متابولیسم اولیه است، غنی سازی سیگنال دهی با واسطه نوکلئوتید حلقوی در ژنوم هسته دیاتوم ها از شواهد قبلی حمایت می کند که این پیام رسان های ثانویه چندین فرآیند غیرزیستی و زیستی ضروری را در دیاتوم ها کنترل می کنند. از سوی دیگر، ژنهای ضروری و منحصربهفرد در سیگنالدهی گیرنده، سازماندهی تاژکها در حین تولید مثل، تقسیم سلولی، نوترکیب DNA و سازماندهی هستهای غنی شدهاند، که نشان میدهد این فرآیندها زمینهساز گونهزایی هستند. اگرچه هنوز مقدماتی است، اما این نتایج نشان میدهد که سازگاری ممکن است به ظهور ژنهای جدید و تنوع فوقالعاده دیاتومهها منجر شده باشد.
بر اساس تعداد ژنوم های فعلی، به نظر می رسد که پان ژنوم دیاتوم ها باز است (شکل 1e) و قانون هیپ [13] پیشبینی کرد که تعداد خانوادههای ژنی، از جمله ژنها و گونههای جدید آنها، تا پایان پروژه به 40000 نفر میرسد (شکل 1f). برای پرداختن به نقش بالقوه آنها در زیست شناسی سلولی دیاتومها، به ویژه اگر به عنوان بخشی از مسیرهای متابولیک شناخته شده مانند فتوسنتز شناسایی شوند، ما نشانگرهای مولکولی را برای نشان دادن محلی سازی درون سلولی پروتئین های کدگذاری شده آنها با استفاده از ExM توسعه خواهیم داد. [14]. پلتفرم فنوتیپ با توان بالای ما نشان می دهد که آیا و چگونه این گونه های ژنتیکی و پروتئین های رمزگذاری شده آنها بر ویژگی های قابل اندازه گیری مانند برداشت نور، جذب کربن، استوکیومتری عنصری یا تقسیم سلولی تأثیر می گذارد یا خیر. یافتههای اولیه نشان میدهد که دیاتومها طیف وسیعی از پاسخهای فنوتیپی را نشان میدهند که احتمالاً ناشی از تنوع ژنتیکی و پیچیدگی ساختاری سلولی است. به طور کلی، ما در حال ساخت یک هستی شناسی مشترک از صفات حیاتی برای توسعه یک رویکرد مبتنی بر ژنومیک تکاملی یکپارچه مناسب برای ساخت مدل های پیش بینی از زیست شناسی سلولی تا علم اکوسیستم هستیم.
نتیجه گیری
هدف 100DGP تولید منابع بیولوژیکی متنوع برای گروهی کلیدی از تولیدکنندگان اولیه است. پروژه ما همچنین با هدف ارائه یک مورد آزمایشی برای تحقیقات پروتیستی در مقیاسی است که برای بسیاری از گروههای پروتیست دیگر هنوز در مراحل اولیه است. برای رشد بیش از 100 ژنوم دیاتومها، ژنومهای دیاتومها و رونوشتهای توالی یافته خارجی را از پروژه های دیگر (به عنوان مثال از Chaetoceros پروژه توالی یابی جنس در JGI). نتایج اولیه ما بر اساس همه منابع شواهدی را ارائه میدهد که مطالعات یکپارچه مقیاسپذیر برای دیاتومها امکانپذیر است و وعده میدهد که گنجینه بالقوهای برای کشف زیستشناسی جدید، از جمله سازگاریها و تعاملات منحصربهفرد (مانند همزیستیهای درونی) باشد. ما امیدواریم که این کار درک ما از تنوع گونههای جهانی، تکامل و عملکرد اکوسیستم را بهبود بخشد، و همچنین انواع ژنتیکی جدیدی را برای پیشبرد بیوتکنولوژی از طریق مهندسی ژنتیک و زیستشناسی مصنوعی ارائه دهد.
قدردانی
TM از دانشکده علوم محیطی، دانشگاه آنگلیا شرقی، نوریچ (بریتانیا) و کالج علوم و مهندسی محیط زیست، دانشگاه اقیانوس چین به خاطر فراهم کردن زمان برای هماهنگی این پروژه در مقیاس بزرگ تشکر می کند. NP تأسیسات میکروسکوپ نوری CMCB را تأیید می کند، مرکز اصلی پلت فرم فناوری CMCB در TU Dresden (آلمان) برای پشتیبانی از میکروسکوپ نوری.
مراجع
- 1.
Field C، Behrenfeld M، Randerson J، Falkowski P. تولید اولیه بیوسفر: ادغام اجزای زمینی و اقیانوسی. علم. 1998; 281 (5374): 237-40. pmd: 9657713 - 2.
Alverson AJ، Roberts WR، Ruck EC، Nakov T، Ashworth MP، Bryłka K، و همکاران. فیلوژنومیکس فتیله دیر سوز تکامل دیاتوم ها را نشان می دهد. Proc Natl Acad Sci USA 2025;122(22):e2500153122. pmid:40440071 - 3.
Sayols S. rrvgo: یک بسته بیوایر برای تفسیر فهرست های اصطلاحات هستی شناسی ژن. Micro Publ Biol. 2023؛ 2023: 10.17912/micropub.biology.000811. pmid:37151216 - 4.
ژائو یی، جیا ایکس، یانگ جی، لینگ وای، ژانگ زی، یو جی، و همکاران. PanGP: ابزاری برای تجزیه و تحلیل سریع پروفایل پانژنومیک باکتری. بیوانفورماتیک. 2014; 30 (9): 1297-9. pmd: 24420766 - 5.
Cheng H، Concepcion GT، Feng X، Zhang H، Li H. مونتاژ جدید حلشده با هاپلوتیپ با استفاده از طرحهای مونتاژ مرحلهای با هیفیاسم. روش های nat 2021; 18 (2): 170-5. pmid:33526886 - 6.
Vaser R، Sović I، Nagarajan N، Šikić M. مونتاژ ژنوم جدید سریع و دقیق از خواندن های طولانی اصلاح نشده. ژنوم Res. 2017; 27 (5): 737-46. pmd: 28100585 - 7.
Grigoriev IV، Nikitin R، Haridas S، Kuo A، Ohm R، Otillar R، و همکاران. پورتال MycoCosm: آماده سازی برای 1000 ژنوم قارچ. Nucleic Acids Res. 2014; 42 (پایگاه داده): D699-704. pmd: 24297253 - 8.
گریگوریف IV، هایس آر.دی، کالون اس، کامل بی، وانگ آ، آهرنت اس، و همکاران. PhycoCosm، یک منبع مقایسه ای ژنومیک جلبکی. Nucleic Acids Res. 2021; 49 (D1): D1004-11. pmid:33104790 - 9.
Hoch L، Herdean A، Woodcock S، Songsomboon K، Osborne B، Ralph PJ. یک روش جدید برای کمی سازی انعطاف پذیری فنوتیپی نشان می دهد که چگونه پلاستیسیته در طول زمان در دیاتومه Thalassiosira weissflogii تغییر می کند. Ecol Evol. 2026؛ 16 (2): e73072. pmd: 41716591 - 10.
ویلار ای، زوایگ ان، وینسنس پی، کروز د کاروالیو اچ، دوچن سی، لیو اس، و همکاران. DiatOmicBase: یک پلت فرم ژن محور چند منظوره برای داده کاوی omics عملکردی در تحقیقات دیاتومها. Plant J. 2025; 121 (6): e70061. pmd: 40089834 - 11.
Dong Z، Xiang W، Jiang W، Guo T. omics گسترش: از میکروسکوپ گسترش به omics فضایی. مول سیست بیول. 2026; 22 (2): 165-78. pmd: 41326779 - 12.
Vancaester E، Depuydt T، Osuna-Cruz CM، Vandepoele K. تحلیل جامع و عملکردی رویدادهای انتقال ژن افقی در دیاتومها. Mol Biol Evol. 2020; 37 (11): 3243-57. pmid:32918458 - 13.
Tettelin H، Riley D، Cattuto C، Medini D. ژنومیکس مقایسه ای: پانژنوم باکتریایی. Curr Opin Microbiol. 2008; 11 (5): 472-7. pmd: 19086349 - 14.
فلوری اس، میکوس اف، فلوم ای، موگ ک، گوسوم اس، بیویس تی، و همکاران. تنوع فراساختاری دیاتوم ها در محیط های کنترل شده و طبیعی Curr Biol. 2025؛ 35 (23): 5709-5720.e4. pmd: 41175869