تجزیه و تحلیل چشم انداز پویا تصمیمات سرنوشت سلولی مدل های پیش بینی کننده رشد عصبی را از داده های تک سلولی ارائه می دهد.

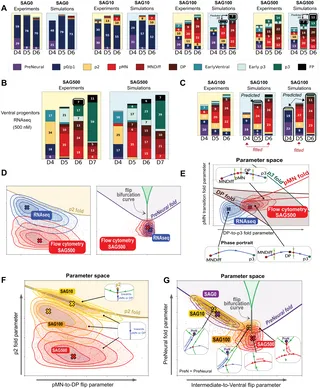
ما پارامترهای مدل را برای هر غلظت SAG با استفاده از فیلتر ذرات با محاسبات بیزی تقریبی محاسبه کردیم. [15,18,67–71] که توزیع احتمال را بر روی مقادیر پارامتر قابل قبول به جای یک تخمین منفرد به بهترین وجه به دست می دهد. این شامل شبیه سازی مسیر هر سلول با استفاده از مدل تصادفی زمان محدود، محاسبه نسبت سلول های شبیه سازی شده تشکیل شده است. AC شبیه سازی شده در فواصل زمانی منظم و مقایسه آنها با همتای تجربی خود (شکل 10C). پارامترها به صورت مکرر تا زمانی که با a همگرا شوند امتحان می شوند توزیع خلفی پارامترها (PPD)، که به طور بهینه نسبت های شرایط سلول تجربی را بازتولید می کند. جزئیات در S2 Appendix، Sec ارائه شده است. B4 برای روش نصب کلی، بخش. B5 به تناسب داده های فلوسیتومتری و بخش. B7 برای داده scRNA-seq.
برازش مدل با دادههای فلوسیتومتری برای تمام سطوح SAG (شکل 11A) و دادههای scRNA-seq برای SAG 500 نانومولار (شکل 11B) تطابق خوبی با نسبتهای تجربی پیشسازهای شکمی دارد. سلولهای FP را نمیتوان به وضوح در دادههای فلوسیتومتری متمایز کرد، اما مدل تخمینی (12٪) از نسبتهای FP در D6 برای SAG 500 نانومولار ارائه کرد، که با آنچه در دادههای scRNA-seq (7٪) در شکل 11B مشاهده شد، مطابقت داشت. اعتبار سنجی اضافی با استفاده از فلوسیتومتری در شکل B9 B در ضمیمه S2 آورده شده است. نکته مهم این است که ما مشاهده کردیم که برازش مجموعه محدودی از نقاط زمانی هنوز امکان پیشبینی دقیق نسبتهای حالت سلول را در نقاط زمانی میانی فراهم میکند (شکل 11C).
شکل 11. تخمین پارامتر و تجزیه و تحلیل انشعاب مدل چشم انداز پویا.
الف نسبت های تجربی (پس زمینه زرد) در مقایسه با نسبت های شبیه سازی شده (پس زمینه آبی) پس از تنظیم پارامتر برای هر غلظت SAG با استفاده از داده های فلوسیتومتری. نسبتهای تجربی با میانگینگیری نسبتها برای 3 اجرای آزمایشی جداگانه برای 10 نانومولار SAG، 100 نانومولار SAG، و برای 5 دوره آزمایشی برای 0 و 500 نانومولار SAG بهدست آمد (ضمیمه S1، بخش A3). نسبتهای پیشبینیشده FP (12%) بهدستآمده از شبیهسازیها در 500 نانومولار SAG با آنهایی (7%) مشاهدهشده در scRNA-seq در همان غلظت SAG مطابقت داشت (به B زیر مراجعه کنید). ب مشابه A برای دادههای scRNA-seq در 500 نانومولار SAG. سی. (سمت چپ) نسبت های تجربی فلوسیتومتری 100 نانومولار SAG. (میانه) برازش مدل فقط به نسبت های تجربی D4 و D6 به طور دقیق نسبت های میانی D5 را پیش بینی می کند. (راست) برازش مدل فقط با نسبت های تجربی D5، نسبت های D4 و D6 را پیش بینی می کند. D–G. نقطه ها پارامترهای پذیرفته شده توسط فیلتر ذرات را با تقریب بیزی نشان می دهند. خطوط کانتور برای تخمین PPD های پیش بینی شده بر روی فضای پارامتر sublandscape مربوطه استفاده می شود (آبی: 500 nM SAG scRNA-seq، قرمز: 500 nM فلوسیتومتری SAG، نارنجی: 100 nM SAG فلوسیتومتری SAG، زرد: 10 nM SAG: purplenFlow0، purple سیتومتری). منحنیهای دیگر مجموعهای از دوشاخهها را نشان میدهند که در آن دوشاخههای چینخوردگی و چرخشی برای مناظر فرعی مختلف رخ میدهند. پانلها (E-G.) حاوی پرترههای فاز فرعی هستند که برای پارامترهای انتخابشده در هر ناحیه مجموعه انشعاب ایجاد میشوند. D. (سمت چپ) مجموعه انشعاب فرعی p2. (راست) مجموعه ای از دوشاخه های فرعی پیش عصبی. فلوسیتومتری و scRNA-seq PPD در 500 نانومولار SAG در همان مناطق فضای پارامتر قرار می گیرند که با منحنی های چین و تلنگر محدود شده است. بنابراین، دینامیک و راه حل های مرتبط از نظر کیفی یکسان هستند. E. انشعاب sublandscape میانی با فلوسیتومتری و scRNA-seq PPD در 500 نانومولار SAG تنظیم شده است. ناحیه سایه دار مجموعه پارامترهایی را نشان می دهد که جذب کننده DP برای آنها وجود دارد. همانطور که PPD آبی روی منحنی دوشاخههای DP همپوشانی دارد، ناهمگنی را مشاهده میکنیم: برخی از سلولها در جذبکننده DP به دام میمانند، در حالی که برخی دیگر به سرعت به p3 منتقل میشوند. فلوسیتومتری PPD (قرمز) تا حد زیادی دردر ناحیه سایهدار که در آن جاذب DP وجود دارد، اگرچه بخشی از سلولها با پارامترهای نزدیک به منحنی تاشو DP هنوز به دلیل نوسانات تصادفی از DP به p3 تغییر میکند. F. مجموعه انشعاب از منظره فرعی که انتقال p2 را کنترل می کند. منحنی تاشو زرد نشان دهنده مقادیر پارامتری است که در آن جذب کننده p2 دوشاخه می شود. در 10 نانومولار SAG، PPD در دو طرف منحنی تاشوی p2 قرار دارد، که نشان میدهد جذبکننده p2 برای نیمی از سلولها وجود دارد، اما کم عمق است و برای نیمی دیگر دوشاخه است، در این صورت سلولها به یک جذبکننده پایین دست تغییر میکنند. در غلظتهای بالاتر SAG (100، 500 نانومولار)، PPDها در خارج از ناحیه سایهدار قرار دارند، که نشان میدهد جذبکننده p2 برای همه سلولها جدا نشده است. 0 نانومولار PPD (بنفش) نشان داده نمی شود زیرا پارامترها به دلیل عدم وجود سلول های p2 در این غلظت SAG همگرا نمی شوند (پارامترها در کل منطقه پخش می شوند). G. مجموعه انشعاب از زیر چشم انداز حاکم بر تصمیم باینری از PreNeural به سرنوشت میانی یا شکمی. پارامترهای دو طرف منحنی معکوس خاکستری مناظر فرعی متفاوتی را به دست میدهند: یکی با منیفولد ناپایدار (آبی) که PreNeural را با یک سرنوشت میانی (p0/p1، p2، pMN) وصل میکند و دیگری (قرمز) با سرنوشت شکمی (EarlyVentral، Early p3، p3، FP). عبور از منحنی چین بنفش باعث دوشاخه شدن کشنده پیش عصبی می شود و سرنوشت توسط حوضه جذبی که سلول در آن قرار دارد تعیین می شود. در غلظت های پایین SAG (0-10 نانومولار)، PPD ها در سمت چپ منحنی معکوس قرار می گیرند، که نشان دهنده انتقال عمدتا به سرنوشت های میانی است. در غلظتهای بالاتر (100 تا 500 نانومولار)، PPDها به نقطه چرخش نزدیک هستند و امکان انتقال ناهمگن به هر دو سرنوشت میانی و شکمی را فراهم میکنند. داده های زیربنای این رقم را می توان در https://crick.figshare.com/projects/Neural_Tube_Decision_Landscape/250460 و در https://doi.org/10.5281/zenodo.15584010 یافت.
https://doi.org/10.1371/journal.pbio.3003953.g011
مقایسه بین فلوسیتومتری و scRNA-seq.
با توجه به سوالات طولانی در مورد رابطه بین سطوح بیان mRNA و اندازه گیری پروتئین، مشخص نبود که آیا پارامترهای مدل متناسب با این دو نوع داده موافق هستند یا خیر. بنابراین، ما PPDهای به دست آمده با تطبیق مدل با دادههای scRNA-seq را با فلوسیتومتری در 500 نانومولار SAG با نمایش آنها بر روی مجموعههای دوشاخهای برای هر زیر چشمانداز مقایسه کردیم تا نشان دهیم چگونه شرایط سیگنالینگ سرنوشت سلول را کنترل میکند. ما دو PPD را از نظر کیفی یکسان تعریف میکنیم اگر منطقه یکسانی از مجموعه انشعاب را اشغال کنند که توسط منحنیهای تا و تلنگر محدود شده است. برای اکثر مناظر فرعی SAG، 500 نانومولار PPD از نظر کیفی یکسان بود (شکل 11D). این توافق بیشتر استحکام ساختار چشمانداز را در بین روشهای اندازهگیری تأیید میکند.
با این حال، یک تفاوت قابل توجه وجود داشت. scRNA-seq PPD منحنی تاشو DP را قطع کرد، در حالی که PPD سیتومتریک این کار را نکرد (شکل 11E)، و سلول های DP را مجبور کرد به سرعت به p3 منتقل شوند. ما فرض کردیم که این اختلاف منعکس کننده افزایش قابل توجه تعداد سلولهای p3 در دادههای scRNA-seq برای D7 است (شکل 11B)، زیرا آنها شامل نورونهای V3 هستند که در D7 فراوان میشوند. در مقایسه، دادههای فلوسایتومتری تنها به D6 گسترش یافت و تعداد سلولهای p3 کمتر بود و نورونهای V3 را شامل نمیشد زیرا تنها سلولهای بیانکننده Sox2 انتخاب شدند. شبیهسازیها نشان داد که جمعیت p3 قابلتوجهی در مقاطع زمانی پایانی نمیتواند تنها با مسیر PreNeural-to-P3 از طریق زیرچشمانداز شکمی به دست آید. این نشان می دهد که عبور PPD از منحنی تاشو DP (شکل 11E) یک مسیر جایگزین را منعکس می کند: انتقال مستقیم از DP به p3. این مدل پیشبینی میکند که سلولها میتوانند از طریق دو مسیر رشدی مجزا به سرنوشت p3 برسند، پیشبینی که در زیر تأیید میکنیم.
مجموعه انشعاب ها تعیین می کنند که چگونه ناهمگنی مولکولی به ناهمگنی محلول تبدیل می شود.
همانطور که در کادر 3 بحث شد، مجموعه ای از دوشاخه ها اساساً چگونگی تأثیر ناهمگنی مولکولی بر نتایج سرنوشت سلول را شکل می دهند. هنگامی که سطح نویز کم باشد، دو سلول که پارامترهای منظر آنها در یک منطقه از مجموعه دوشاخه قرار دارند، تصمیمات یکسانی را با احتمال زیاد اتخاذ خواهند کرد. برعکس، اگر یک منحنی دوشاخه آنها را به مناطق مجزا جدا کند، سلولهای تقریباً یکسان میتوانند سرنوشت متفاوتی را انتخاب کنند. این نشان می دهد که ناهمگونی در نتایج تمایز در بین سلول های مولکولی مشابه از عبور جمعیت سلولی از مرزهای دوشاخه به جای نویز ذاتی ناشی می شود (شکل 1B). بنابراین، درک ساختار مجموعه انشعاب و نحوه نگاشت پارامترهای برآورد شده بر روی آن برای تفسیر ناهمگونی تصمیمات در دادههای تک سلولی ضروری است. ما چهار PPD بهدستآمده با برازش مدل به دادههای فلوسیتومتری در غلظتهای ثابت SAG را تجزیه و تحلیل کردیم.
مجموعه ای از انشعاب ها که انتقال مستقیم از p2 را کنترل می کند شامل یک منحنی دوشاخه تاشو است (شکل 11F). عبور از این منحنی، جذب کننده p2 را بی ثبات می کند و سلول را مجبور می کند به pMN یا DP تغییر وضعیت دهد. در 10 نانومولار SAG، پارامترها در دو طرف منحنی تاشو قرار میگیرند و ناهمگنی ایجاد میکنند که در آن برخی از سلولها در p2 باقی میمانند و برخی دیگر در حال انتقال هستند. این دو پایداری در جمعیت سلولی p2 و pMN مشاهده شده در D6 در شکل 6H را بازتولید کرد. در غلظت های بالاتر (100، 500 نانومولار)، PPD ها در زیر منحنی تاشو قرار می گیرند، که نشان می دهد که جذب کننده p2 برای همه سلول ها جدا شده است و منجر به تمایز برابر با pMN می شود. حتی در غلظت کم SAG (10 نانومولار)، این پروتکل آزمایشگاهی قادر به تثبیت حالت p2 نیست. این مدل پیشبینی میکند که تولید یک جمعیت دائمی از سلولهای p2 با مدولاسیون سیگنالینگ Shh به تنهایی امکانپذیر نیست.
در مجموعه انشعاب زیر چشم انداز PreNeural، یک منحنی معکوس و یک منحنی چین در یک نقطه برگشت چین قطع می شود (شکل 11G). در SAG پایین (0.10 نانومولار)، PPD ها در سمت چپ منحنی انشعاب معکوس قرار می گیرند و سلول ها را به سمت سرنوشت های میانی هدایت می کنند. در SAG بالا (100، 500 نانومولار)، PPD ها در نزدیکی نقطه اوج متمرکز می شوند و نتایج ناهمگنی بین دو سرنوشت ایجاد می کنند.
نمونه های آموزنده دیگری که رابطه بین انشعاب و نقشه برداری PPD و اعتبار سنجی توافق بین scRNA-seq و داده های فلوسیتومتری را نشان می دهد در بخش ضمیمه S2 بحث شده است. B5.1 و Sec. B7.3).
به طور کلی، مدل برازش شده با دقت دینامیک تجربی (ویدئوهای S1-S3) را ضبط کرد و رفتار دوشاخه مشاهدهشده را با موفقیت بازتولید کرد. این چارچوب نشان میدهد که چگونه دوشاخههای منفرد برای ایجاد ساختارهای تصمیمگیری پیچیده ترکیب میشوند و توضیح کمی و کیفی برای الگوبرداری وابسته به سیگنال Shh بافت عصبی شکمی ارائه میدهد و پیشبینیهای قابل آزمایشی را انجام میدهد.
پیش بینی مدل تغییرات چشم انداز ناشی از سیگنالینگ
ما از مدل برازش برای توسعه و آزمون فرضیههای مختلف استفاده کردیم. ما ابتدا پرسیدیم که آیا تغییرات زمانی در سیگنال دهی Shh منجر به پیکربندی مجدد منظره فوری یا تاخیری می شود. ما بر روی سه نقطه تصمیم گیری اصلی تمرکز کردیم: انتقال از پیش عصبی به مناظر فرعی میانی یا شکمی. انتقال از p0/p1 به p2 که منجر به pMN می شود. و اتصال از DP به p3 مسئول توپولوژی دایره ای چشم انداز است.
برای پرداختن به دو راهحل اول، مدل را به یک نسخه سادهشده که بر روی این انتقالها متمرکز است، دوباره کار کردیم (شکل 12A). این مدل کاهشیافته چندین حالت سلولی مرتبط (ترکیب NMP/PreNeural، EarlyVentral/Early p3/p3، و pMN/MN/DP) را جمعآوری میکند و در عین حال توپولوژی ضروری یک منظره تلنگر باینری را به دنبال یک مسیر انتقال خطی حفظ میکند (ضمیمه S2، بخش B8). در این چارچوب، زیرچشمانداز شکمی از یک حالت p3* تشکیل میشود و زیرچشمانداز میانی شامل دو حالت است: p2 و حالت ترکیبی pMN/MNDiff/DP که به pMN* تغییر نام داد. این مدل به دقت نسبت های حالت های سلولی مشاهده شده در غلظت های مختلف SAG را بازتولید کرد (شکل 12C). مدل کامل چشمانداز جهانی پیشبینیهای معادلی را برای این آزمایشهای سیگنالدهی آشفتگی تولید میکند. جزئیات در S2 Appendix Sec ارائه شده است. B6. در اینجا نسخه ساده شده است.
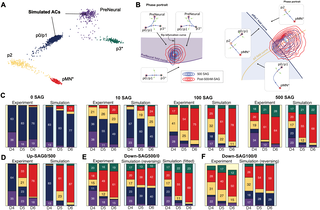
شکل 12. اعتبار سنجی تجربی پیشبینیهای مدل با سیگنالهای اغتشاش.
الف داده های شبیه سازی شده که جاذبه ها و مسیرهای انتقال را نشان می دهد. نقاط نشان دهنده سلول های شبیه سازی شده در 3 نقطه زمانی (D4، D5، D6) هستند. اینها در AC های شبیه سازی شده با حالت سلولی که با آن مطابقت دارند رنگ آمیزی می شوند. ب PPD از مدل برازش برای شرایط SAG 500 نانومولار (آبی) و شرایط SAG پس از بالا (قرمز) تقریباً یکسان هستند و نشان میدهد که این دو شرایط تقریباً معادل هستند. (سمت چپ) طرح PPD ها بر روی مجموعه دوشاخه های زیرمنظر معکوس باینری. (راست) طرح ریزی PPD بر روی مجموعه دوشاخه های زیرمنظر خطی. سی. مقایسه میانگین نتایج شبیهسازی (پسزمینه آبی) برای شرایط ثابت SAG با نتایج تجربی مربوطه (پسزمینه زرد). نتایج به طور متوسط بیش از 10000 نسبت شبیه سازی شده با استفاده از پارامترهای مشتق شده از PPD های برازش شده (ضمیمه S2، بخش B8) محاسبه می شوند. آقای مانند C، اما برای حالت Up-SAG0/500. پیش بینی با داده های تجربی مطابقت دارد. این نشان می دهد که تأخیر در کاربرد SAG تا 24 ساعت سلول ها را ملزم به تمایز به pMN می کند* به جای p3*. ه. به عنوان C، اما برای شرایط Down-SAG500/0، به شرح زیر اصلاح شده است: (وسط) از PPD های نصب شده (500 و 0 نانومتر SAG) به دست آمده از C استفاده می کند و یک پاسخ تغییر سیگنال آنی را فرض می کند، (راست) از PPD برازش استفاده می کند. دومی تطابق بهتری با نتایج تجربی نشان می دهد که عدم پاسخ به تغییر سیگنال را نشان می دهد. خوب همانطور که برای دو پانل اول E برای شرایط Down-SAG100/0، که در آن PPD های نصب شده (100 و 0 نانومتر SAG) به دست آمده از C استفاده می شود. با وجود سطوح سیگنال پایین تر، همان پدیده ای را مشاهده می کنیم که در E (پانل میانی). داده های زیربنایی این رقم را می توان در https://crick.figshare.com/projects/Neural_Tube_Decision_Landscape/250460 یافت.
https://doi.org/10.1371/journal.pbio.3003953.g012
پالس های زمان ما از این مدل برای شبیهسازی اثر پالسهای زمانی سیگنالینگ Shh بر نسبت پیشسازهای عصبی استفاده کردیم. ما ابتدا اثر 24 ساعت بدون SAG را شبیه سازی کردیم، به دنبال آن 48 ساعت با 500 نانومولار SAG. با توجه به فرضیه واکنش لحظه ای چشم انداز، افزایش SAG باعث دوشاخه های فوری می شود و حالت های پشتی را بی ثبات می کند (p0-p2). این پیشبینی میکند که در D4، پس از 24 ساعت با 0 نانومولار SAG، سلولها حالت p0/p1 را اتخاذ میکنند، در این مرحله یک افزایش ناگهانی به 500 نانومولار SAG این حالت را بیثبات میکند و باعث میشود سلولها به جای مسیر شکمی معمول به سمت p3، بیشتر به سمت زیر چشمانداز میانی حرکت کنند. از آنجایی که حالت p2 در 500 نانومولار SAG وجود ندارد، سلولها به سرعت یک هویت pMN* را اتخاذ میکنند. نکته مهم، از آنجایی که پیشبینی میشود اکثر سلولها جاذبه پیشعصبی را ترک کردهاند و در D4 متعهد به سرنوشتی میانی هستند، تعداد کمی از سلولهای پیشعصبی برای انتقال به زیر چشمانداز شکمی باقی خواهند ماند. بنابراین، تحت این فرضیه، مدل سلولهای p3* و جمعیت خالصتری از pMN* را در D5-D6 در مقایسه با قرار گرفتن در معرض ثابت با 500 نانومولار SAG پیشبینی میکند.
ما به طور تجربی این فرضیه را با کشت سلولها در غیاب SAG به مدت 24 ساعت، از D3 تا D4 آزمایش کردیم و سپس 500 نانومولار SAG را برای 48 ساعت بعدی اضافه کردیم (D4-D6). ما نسبت انواع سلول را در D4، D5 و D6 با استفاده از فلوسیتومتری تجزیه و تحلیل کردیم. داده های تجربی با شبیه سازی ها مطابقت خوبی دارند، با اکثریت سلول ها هویت pMN* در D6 (شکل 12D). این نتایج نشان می دهد که پاسخ به افزایش سطوح SAG منجر به تغییرات قابل پیش بینی سریع در چشم انداز شده است.
سپس رژیم ضربان دار مخالف را شبیه سازی کردیم – 500 نانومولار SAG به مدت 24 ساعت و سپس 0 نانومولار SAG برای 48 ساعت. برای مطالعه تاثیر بر روی چشم انداز حذف ناگهانی SAG در D4. با فرض اینکه سلولها فوراً به حذف سیگنال پاسخ میدهند و باعث دوشاخههای آنی در چشمانداز میشوند، مدل بازیابی حالت p0/p1 را پیشبینی میکند و سلولهایی که تا D4 به حالت p2 نرسیدهاند در p0/p1 به دام میافتند. بنابراین، ما انتظار داریم نسبت بیشتری از سلولهای p0/p1 در D6 در مقایسه با قرار گرفتن مداوم در معرض 500 نانومولار SAG باقی بمانند.
نتایج تجربی نتیجه متفاوتی را با این پیشبینی نشان داد: سلولهای pMN* که در D5 و D6 غالب بودند و سلولهای p0/p1 تا حد زیادی غایب بودند، همانطور که در مورد مواجهه ثابت (شکل 12E). فقدان تقریباً کامل p0/p1 نشان دهنده تعهد برگشت ناپذیر به سرنوشت pMN* است و اینکه سلول ها به خروج فوری سیگنال پاسخ نمی دهند. این با مشاهدات تجربی قبلی دوپایداری و هیسترزیس در مشخصات پیش سازهای عصبی مطابقت دارد. [72].
شباهت در نسبت حالات سلولی بین قرار گرفتن در معرض 500 نانومولار ثابت و حذف SAG پس از 24 ساعت، فرض پاسخ سلولی آنی به قطع سیگنال را رد می کند. برای تشخیص اینکه آیا پاسخ به حذف SAG تاخیر داشت یا به طور کامل وجود نداشت، ما مدل را مستقیماً با داده های تجربی برازش کردیم (شکل 12E) و PPD حاصل را «بعد از 500 nM-SAG» با آن از قرار گرفتن در معرض مداوم تا 500 نانومولار SAG مقایسه کردیم. PPD ها یکسان بودند (شکل 12B)، که نشان می دهد که چشم انداز پس از خروج SAG بدون تغییر باقی مانده است و حالت های پشتی (p0-p2) بهبود نمی یابند. نتایج مشابه از انتقال SAG 100 به 0 نانومولار نشان میدهد که 100 نانومولار SAG نیز برای بیثباتی غیرقابل برگشت p0/p1 کافی است (شکل 12F). تجزیه و تحلیل بیشتر، از جمله آزمایشی با استفاده از یک پالس 12 ساعته کوتاهتر 500 نانومولار SAG، تأیید کرد که اثر چشمانداز پایدار در طول دوره پس از خروج ادامه داشت (ضمیمه S2، بخش B6).
اعتبار سنجی تجربی توپولوژی همگرا در نهایت، مدل جهانی پیشبینی میکند که در 500 نانومولار SAG، بخش قابلتوجهی از سلولها از طریق مسیر میانی DP به p3 میرسند و دیرتر از سلولهایی که مسیر مستقیم شکمی را میگیرند، میرسند. مطابق با این پیشبینی، دادههای scRNA-seq کاهش همزمان DP و تجمع p3 بین D6 و D7 را نشان داد (شکل 11B).
برای آزمایش این پیشبینی، ما دو رژیم سیگنالینگ را شبیهسازی کردیم: ثابت 500 نانومولار SAG در مقابل 24 ساعت در 0 نانومتر و سپس 72 ساعت در 500 نانومولار SAG (شکل 13A، 13B). ما دنبال کردیم که سلولهای مسیری را دنبال میکنند تا به p3 برسند. در حالت سیگنال دهی دوم، اکثر سلول های p3 مسیر میانی DP-to-p3 را به جای مسیر شکمی از طریق EarlyVentral و Early P3 انتخاب کردند (شکل 13C). تجزیه و تحلیل زمان ورود سینتیک های متفاوتی را برای دو مسیر نشان داد. سلول ها از طریق مسیر شکمی زودتر به p3 می رسند، در حالی که مسیر میانی منجر به تاخیر در رسیدن به دلیل ماندن در حالت های میانی کم عمق می شود (شکل 13D).
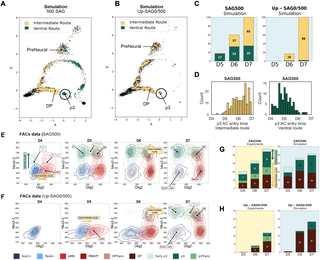
شکل 13. انتقال از DP به p3 را تأیید کنید.
الف مسیرهای سلولی شبیه سازی شده با استفاده از PPD از مدل سازی (شرایط SAG 500 نانومولار). نقاط نشان دهنده سلول های شبیه سازی شده در 4 نقطه زمانی (D4-D7) هستند. سلول هایی که به p3 AC به D7 می رسند بر اساس تاریخچه انتقالشان رنگ می شوند: زرد برای سلول هایی که مسیر میانی را دنبال می کنند و سبز برای آنهایی که مسیر شکمی را دنبال می کنند. نقاط سیاه نشان دهنده سلول هایی هستند که سرنوشت های پایانی جایگزینی را اتخاذ کرده اند (مانند MNDiff یا FP) یا هنوز به p3 تا D7 نرسیده اند. ب مشابه A، اما شبیه سازی یک پالس SAG تاخیری با تغییر پارامترها از 0 به 500 نانومتر SAG بعد از D4. سلول های کمتری به طور قابل توجهی مسیر شکمی را دنبال می کنند، زیرا اکثر سلول ها در هنگام تغییر سیگنال مسیر میانی را با D4 طی کرده اند. سی. نسبت سلولهای شبیهسازیشده در p3 AC برای هر روز (D5 تا D7)، نسبت به تعداد کل سلولهای p3 در D7 محاسبه شده و با مسیری که از آن سرچشمه میگیرند رنگبندی میشوند. (سمت چپ) 500 نانومتر SAG. (راست) بالا-SAG0/500 nM وضعیت SAG. اکثر سلول های p3 در این شرایط از مسیر میانی منشا می گیرند. آقای هیستوگرامهایی که تعداد سلولها (محور y) را در نقطه زمانی (محور x) نشان میدهند که در آن سلولهای شبیهسازی شده برای اولین بار به p3 AC میرسند، با رنگهایی که مسیر منشأ آنها را نشان میدهند: مسیر میانی (زرد) یا مسیر شکمی (سبز). توزیعها منعکسکننده ناهمگنی زمانبندی هستند: سلولهایی که از طریق مسیر میانی به p3 میرسند تمایل دارند در نقاط زمانی دیررس (D6-D7) برسند. در مقابل، سلولهایی که مسیر شکمی را دنبال میکنند، تمایل دارند زودتر به p3 (D4-D5) برسند، در حالی که تعداد کمی از سلولهای جدید از طریق این مسیر پس از D6 میرسند. خب، ای. نمودارهای دوبعدی در هر ژن (Olig2-Nkx2.2 نشان داده شده) از خوشه های شناسایی شده در مجموعه داده های فلوسیتومتری در هر نقطه زمانی. نقطه ها سلول های منفرد را نشان می دهند و خطوط کانتور نشان دهنده تراکم سلول هستند (تنها زمانی ترسیم می شود که خوشه دارای بیش از 150 سلول باشد). بدون Nkx6.1، p0/p1 را نمی توان از سلول های p2 متمایز کرد و این دو در سلول های Pax6+ ترکیب می شوند. PreNeural، EarlyVentral و FP در سلول های Sox2+ ترکیب می شوند. E. 500 نانومولار SAG: در اوایل D4، گروهی از سلول ها مسیر شکمی را با تنظیم کردن Nkx2.2 دنبال می کنند و توسط D5 به p3 می رسند. F. شرایط SAG Up-SAG0/500 nM: بدون SAG به مدت 24 ساعت، سلول ها مجبور شدند مسیر میانی را انتخاب کنند و اکثر آنها دارای تنظیم بالا Pax6 توسط D4 بودند. هنگامی که SAG اعمال می شود، آنها فقط می توانند با عبور از pMN (D5)، سپس DP (D6)، و به دنبال آن یک انتقال مستقیم DP به p3 (D7) به p3 برسند. ز. (سمت چپ) 500 نانومولار SAG: نسبت های تجربی DP ACs و p3Trans (مسیر میانی) و p3 و p3 AC اولیه (مسیر شکمی) در نقاط زمانی پایانی (D5-D7). (راست) 500 نانومولار SAG: نسبتهای شبیهسازیشده از DP، P3 اولیه و P3 AC در نقاط زمانی آخر (D5-D7). نسبتهای p3 را میتوان به دو نوع سلول بسته به مسیری که دنبال میکردند تقسیم کرد. ساعت همان G برای حالت Up-SAG0/500 nM. در شبیهسازی (سمت راست)، بیشتر سلولهای p3 در D7 از مسیر میانی همانطور که در B نشان داده شده است، منشأ میگیرند، که با آزمایش F مطابقت دارد. دادههای زیربنای این شکل را میتوان در https://crick.figshare.com/projects/Neural_Tube_Decision_Landscape/250460 و در https://doi.org/15.804.
https://doi.org/10.1371/journal.pbio.3003953.g013
برای آزمایش این پیشبینیها، آزمایشهایی را انجام دادیم که دوره زمانی را تا D7 گسترش دادیم (شکل 13E، 13F) و اثر افزودن 500 نانومولار SAG در D4 پس از 24 ساعت بدون SAG را تحلیل کردیم. تحت این شرایط، مدل پیشبینی میکند که سلولهای PreNeural مجبور هستند مسیر میانی را طی کنند، زیرا تقریباً همه سلولها در ابتدا به p0/p1 تغییر میکنند. متعاقبا، افزایش سطوح SAG به 500 نانومولار SAG جذب کننده های p0/p1 و p2 را بی ثبات کرد و p3 را از طریق زین DP در دسترس قرار داد. دادههای فلوسیتومتری در D7 نشان داد که سلولها از DP به p3 انتقال یافتهاند، که با کاهش بیان Olig2 در حالی که Nkx2.2 حفظ میشود مشخص میشود (شکل 13F). این به ویژه در مورد D7 واضح است. تحت شرایطی که قرار گرفتن در معرض SAG 24 ساعت به تعویق افتاد، سلولهای p3 علیرغم عدم وجود تقریباً P3 اولیه در زمانهای قبلی ظاهر شدند و احتمال وجود مسیر شکمی را رد کردند.
ما نسبتهای شبیهسازیشده AC، p3 اولیه و p3 را برای دو شرایط تجربی (شکل 13G، 13H) با استفاده از PPDهایی که قبلاً برای 0 و 500 نانومولار بهدستآمده بودند مقایسه کردیم (این آزمایش در برازش مدل گنجانده نشد). این مدل نسبت افزایش یافته سلولهای DP و انتقال از DP به p3 را از طریق مسیر میانی (شکل 13H) (ویدیوهای S3-S4) ثبت کرد.
با هم، این نتایج بیشتر مدل را تأیید می کند و رابطه پیچیده بین دینامیک سیگنالینگ و توزیع سرنوشت سلول را نشان می دهد. تجزیه و تحلیل نشان می دهد که سطح بالای گذرا از سیگنالینگ Shh باعث تعهد برگشت ناپذیر به سرنوشت شکمی می شود، در حالی که از مسیرهای دوگانه به هویت p3 پشتیبانی می کند. این یافتهها نشان میدهند که سلولها چگونه اطلاعات سیگنالینگ را برای تصمیمگیری قوی درباره سرنوشت یکپارچه میکنند و حفظ میکنند، با مدل ریاضی چارچوبی برای درک اصول دینامیکی زیربنایی فراهم میکند.