نقل قول: Whitaker WR (2026) با استفاده از سنجش هورمون استرس پاتوژن برای داروهای زنده. PLoS Biol 24(8):
e3003940.
https://doi.org/10.1371/journal.pbio.3003940
منتشر شده: 26 آگوست 2026
حق چاپ: © 2026 Weston R. Whittaker. این یک مقاله با دسترسی آزاد است که تحت شرایط مجوز Creative Commons Attribution توزیع شده است که استفاده، توزیع و تکثیر نامحدود در هر رسانه را مجاز میکند، مشروط بر اینکه نویسنده و منبع اصلی درج شده باشند.
تامین مالی: این کار توسط مؤسسه ملی غذا و کشاورزی وزارت کشاورزی ایالات متحده (USDA) و کمک های مالی فدرال تحت پروژه PEN05115 (به WRW) پشتیبانی شد. سرمایهگذاران هیچ نقشی در طراحی مطالعه، جمعآوری و تجزیه و تحلیل دادهها، تصمیمگیری برای انتشار، یا تهیه نسخه خطی نداشتند.
منافع رقابتی: من خطمشی مجله را خواندهام و نویسندگان این دستنوشته دارای علایق رقیب زیر هستند: WRW یکی از بنیانگذاران و کارمندان سابق Novome Biotechnologies (دیگر عملیاتی نیست)، شرکتی که درمانهای میکروبی مهندسی شده را توسعه میدهد و مخترع حق ثبت اختراع مربوط به باکتریهای مهندسی شده روده است.
پاتوژن ها می توانند پاسخ استرس بدن را استراق سمع کنند. کاتکول آمین های نوراپی نفرین (NE؛ همچنین به عنوان نوراپی نفرین شناخته می شود) و اپی نفرین (Epi؛ همچنین به عنوان آدرنالین شناخته می شود) از طریق گردش خون و انتشار موضعی از نورون های سمپاتیک به روده می رسند، جایی که میکروب های روده می توانند بیشتر در دسترس بودن خود را از طریق جذب و متابولیسم تغییر دهند. [1,2]. پاتوژن های روده ای از این مولکول های میزبان برای تنظیم رشد، تحرک و حدت استفاده می کنند [2,3]. بنابراین، سیگنالهایی که معمولاً به عنوان ارتباط بین بافتهای میزبان توصیف میشوند، میتوانند به سیگنالهای محیطی برای باکتری تبدیل شوند. دادن دسترسی مهندسی شده به سیگنال های عصبی و غدد درون ریز می تواند اشکال جدیدی از کنترل فیزیولوژیکی ایجاد کند، اما مسیرهای حسی طبیعی با شبکه های تنظیمی میزبان اصلی خود در هم تنیده شده اند. در این شماره از زیست شناسی PLOSSrivastava و همکارانش نشان می دهند که چگونه مسیر QseBC حساس به آدرنرژیک از انتروهموراژیک اشرشیاکلی (EHEC) را می توان به یک پروبیوتیک مرتبط بالینی منتقل کرد E. coli Nissle 1917 و به عنوان یک سیستم مدولار در پاسخ به کاتکول آمین ها بازسازی شد [4,5].
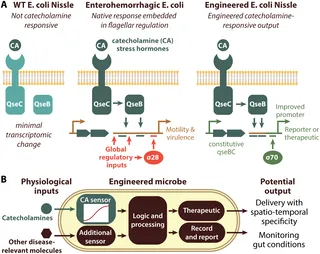
E. coli Nissle اکنون QseBC را رمزگذاری میکند، یک سیستم دو جزئی که در آن حسگر غشایی کیناز QseC یک سیگنال خارج سلولی را تشخیص میدهد و تنظیمکننده پاسخ شریک خود QseB را فسفریله میکند، که به نوبه خود رونویسی ژن را تغییر میدهد. پروتئین های QseB و QseC آن در سطح اسید آمینه حدود 97 درصد با همتایان EHEC خود یکسان هستند. تجزیه و تحلیل رونویسی نشان داد که NE حداقل تغییرات را در Nissle نوع وحشی ایجاد کرد، در حالی که بیان EHEC QseBC در Nissle مدولاسیون وابسته به NE گستردهتری از ژنهای دخیل در بیوژنز تاژکها، سنجش حد نصاب، سازگاری با استرس و تشکیل بیوفیلم را ایجاد کرد. [5]. برای شناسایی پروموترهای مناسب برای بیان پروتئینهای هترولوگ وابسته به NE، نویسندگان چندین پروموتر پرچمدار EHEC را در بالادست یک گزارشگر فلورسنت قرمز در یک Nissle حاوی EHEC QseBC قرار دادند. فقط پروموتر EHEC flhDC فعالسازی وابسته به NE قابل توجه، البته ضعیف را نشان داد. پروموتر flhDC چندین ورودی نظارتی، از جمله تنظیم کننده های جهانی و یک هسته آشکار وابسته به سیگما-28 مرتبط با نقطه بازرسی تاژک FliA-FlgM را یکپارچه می کند، که به طور بالقوه بیان را کاهش می دهد و پیچیدگی نظارتی ناخواسته را ایجاد می کند. بنابراین، نویسندگان پروموتر را کوتاه کردند تا توالیهای بالادست را حذف کنند و بیان QseBC را تنظیم کنند (شکل 1A)، که پاسخدهی را بهبود بخشد. برای کاهش بیشتر تنوع وابسته به زمینه، آنها هسته آشکار سیگما-28 را با پروموترهای مصنوعی سیگما-70 جایگزین کردند و سایت های اتصال QseB را بازسازی کردند. بهترین سازه آنها القای 4 برابری را در مقایسه با القای کمتر از 1.5 برابری از حساس ترین پروموتر اصلاح نشده تولید کرد. نکته مهم این است که این بازسازی خروجی را از بخشهایی از مقررات بومی تاژک جدا کرد و تفسیر خروجی حسگر و مهندسی آینده را سادهتر کرد.
شکل 1. کنترل مهندسی پاسخگو به کاتکول آمین اشرشیاکلی Nisle 1917
(الف) یک نوع وحشی E. coli Nissle یک سیستم دو جزئی QseBC را رمزگذاری می کند که نزدیک به سیستم انتروهموراژیک است. E. coli (EHEC) اما کمترین پاسخ رونویسی به کاتکول آمین های نوراپی نفرین و اپی نفرین را تحت شرایط آزمایش شده نشان داد. در EHEC، سیگنالینگ QseBC حساس به کاتکول آمین به بومی تغذیه می شود flhیک پروموتر DC که در یک شبکه گستردهتر از مقررات جهانی و تاژکدار، از جمله یک هسته پروموتر ظاهری وابسته به سیگما-28 تعبیه شده است. Srivastava و همکاران EHEC را انتقال دادند qseقبل از میلاد E. coli Nissle و خروجی رونویسی خود را با تنظیم سازنده بازسازی می کند qseبیان BC، برش پروموتر بومی، جایگزینی هسته ظاهری وابسته به سیگما-28 با پروموترهای مصنوعی وابسته به سیگما-70، و بازسازی یک موتیف مرتبط با QseB. مدار به دست آمده پاسخ کاتکول آمین را حفظ می کند در حالی که یک پاسخ رونویسی بزرگتر و سازگارتر ایجاد می کند که می تواند یک گزارشگر یا محموله درمانی را کنترل کند و یک ماژول سنجش کاتکول آمین قابل حمل را ایجاد کند. (ب) معماری مدارهای آینده ممکن است حس کاتکول آمین را با ورودیهای فیزیولوژیکی مرتبط با بیماری ترکیب کنند و از بهره، منطق، آستانه یا حافظه برای پردازش این سیگنالها استفاده کنند. چنین مدارهایی می توانند تولید درمانی را به حالت های فیزیولوژیکی خاص مرتبط کنند یا یک رکورد قابل بازیابی از سیگنال های موجود در روده ایجاد کنند. شکل ایجاد شده در Adobe Illustrator.
https://doi.org/10.1371/journal.pbio.3003940.g001
این مطالعه همچنین تشریح خود سنسور را آغاز می کند. جهش زایی هدایت شده با ساختار، بقایای حوزه حسگر QseC را شناسایی می کند که به سیگنال دهی کمک می کند. جهش این باقیمانده ها باعث کاهش پاسخگویی به کاتکول آمین ها و مولکول سنجش حد نصاب AI-3 می شود. اگرچه این جهشها هنوز توضیح نمیدهند که چرا پروتئینهای بسیار مشابه EHEC و Nissle در پاسخ لیگاند متفاوت هستند، آنها یک نقطه شروع قابل حمل برای نقشهبرداری عملکرد QseC فراهم میکنند. سپس نویسندگان پروموتر مهندسی شده را به ترشح rCRF(9-41)، یک آنتاگونیست α-مارپیچ گیرنده فاکتور آزادکننده کورتیکوتروپین (CRF) موش صحرایی مرتبط کردند. هنگامی که CRF همزمان با LPS تجویز شد، پیش تیمار با rCRF خالص شده (9-41) بیان شده از ماژول سنجش کاتکول آمین، بیان نتیجه سیتوکین های پیش التهابی را در ماکروفاژهای تمایز یافته THP-1 مهار کرد و افزایش نفوذپذیری پاراسلولی در سلول های Caco-2 را کاهش داد، که نشان می دهد فعالیت دوگانه بیان می شود. این کار یک گام اولیه اما مشخص به سمت درمانی است که تولید را به سیگنال های میزبانی که آنها حس می کنند پیوند می دهد.
چه چیزی ممکن است چنین ماژول سنجش کاتکول آمین را فعال کند؟ باکتری های مهندسی شده روده اکنون برنامه ریزی شده اند تا متابولیت های مرتبط با التهاب، مکمل های غذایی و سایر بیماری های روده را حس کنند و یا بلافاصله پاسخ دهند یا خاطره ای ماندگار از قرار گرفتن در معرض آن ذخیره کنند. [6,7]. QseBC این جعبه ابزار را برای میزبانی سیگنالهای عصبی غدد درونریز گسترش میدهد، که میتواند با زمان و مکان روده متفاوت باشد. بر خلاف یک داروی معمولی با برنامه دوز تعیین شده در خارج از بدن، باکتری مهندسی شده می تواند تولید را بر اساس سیگنال هایی از جایی که قرار دارد تنظیم کند. این می تواند برای بیماری هایی که در طول زمان تغییر می کنند یا از نظر مکانی موضعی هستند مفید باشد. یک طراحی پاسخگوی مستقیم، مانند آنچه که توسط Srivastava و همکارانش ایجاد شده است، ممکن است محموله های درمانی را در طول قرار گرفتن در معرض کاتکول آمین آزاد کند. حسگر دوم برای التهاب یا مکان آناتومیکی میتواند زمینه را اضافه کند تا خروجی به ترکیب خاصی از سیگنالهای میزبان و محلی نیاز داشته باشد. روش دیگر، این سویه ممکن است به طور مداوم درمان را ارائه دهد در حالی که مدار حافظه قرار گرفتن در معرض کاتکول آمین را ثبت می کند. سپس تعیین توالی باکتری های بازیابی شده از مدفوع می تواند سابقه مواجهه را با پاسخ درمانی مرتبط کند [8] (شکل 1B).
اجرای این طرحها مستلزم کالیبره کردن معنای فعالیت QseBC در داخل بدن است. یک آزمایش کامل برای نشان دادن حساسیت و ویژگی ماژول در محیط مولکولی پیچیده روده نیاز دارد. از آنجایی که مدار به AI-3 نیز پاسخ میدهد، خروجی آن ممکن است سیگنالهای حد نصاب میکروبی را به اندازه استرس میزبان منعکس کند. علاوه بر این، کاتکول آمینهایی که باکتریها با آنها مواجه میشوند، صرفاً یک موضوع استرس میزبان نیست، زیرا این هورمونها توسط اعصاب بهصورت موضعی در دیواره روده آزاد میشوند، و اینکه چه مقدار به شکل فعال به روده میرسد، خود توسط میکروبهای محلی شکل میگیرد. [1,2]. پروموترهای بهینه شده القایی 4 برابری تولید می کنند که ممکن است برای به حرکت درآوردن یک تقویت کننده یا مدار حافظه کافی باشد، اما ممکن است برای تولید مستقیم برخی محموله های پروتئینی کافی نباشد، جایی که ممکن است محدوده دینامیکی بیشتر یا توان پیک بالاتری مورد نیاز باشد. علاوه بر خود حسگر، درمانهای باکتریایی زنده همچنان با محدودیتهای عمدهای در دستیابی به فعالیت درمانی کافی و فراوانی باکتریایی مواجه هستند و در عین حال حفظ زیستی را تضمین میکنند. [9,10]. چنین اقداماتی ممکن است خود حالت سلولی را که حسگر در آن کار می کند تغییر دهد. اینکه آیا پاسخ در این زمینه ها قوی و قابل تفسیر باقی می ماند باید نشان داده شود، اگرچه حذف ورودی های تنظیمی طبیعی پیچیده این کالیبراسیون را قابل قبول تر می کند.
اگرچه سریواستاوا و همکارانش با یک مسیر چالش برانگیز، ضعیف القا شده و بسیار متقابل تنظیم شده شروع می کنند، یک الگوی عملی برای توسعه ماژول های حسگر با محدوده دینامیکی بهبود یافته و کاهش وابستگی به زمینه ارائه می دهند. آنها راهبردی را نشان دادند که میتواند برای سایر مسیرهای حسگر میزبان اعمال شود تا دامنه سیگنالهای فیزیولوژیکی موجود برای میکروبهای مهندسی شده را گسترش دهد و از سویههای درمانی که به شرایطی که در داخل بدن با آن مواجه میشوند پاسخ میدهند و ثبت میکنند، پشتیبانی کند.